Ölümcül Bir Yolculuk: Kuduz Virüsünün Hücresel Anatomisi ve Sırları

Yazan: M. Onat Özten
Düzenleyen: Ümit Sözbilir
Özet: Kuduz virüsü (Rabies lyssavirus); zoonotik kökenli, ölümcül seyreden nörotropik bir patojendir. Rhabdoviridae ailesine ait olan bu virüs, mermi şeklindeki yapısı ve negatif iplikli tek sarmallı RNA [(-) sense RNA] genomuyla tanımlanır. Genomunda beş yapısal proteini kodlayan gen dizilimi yer alır: N, P, M, G ve L. Bulaşma genellikle enfekte bir hayvanın ısırığı sonucu tükürük aracılığıyla gerçekleşir. Virüs kas dokusuna girdikten sonra öncelikle sinir uçlarını hedef alır. İlk olarak nöromüsküler kavşaktaki nikotinik asetilkolin reseptörlerine (nAChR) tutunarak sinir hücrelerinin zarına bağlanır. Ardından nöronal hücre yapışma molekülü (NCAM) ve p75NTR reseptörleri aracılığıyla sinir hücresine girer. Retrograd aksonal taşıma yoluyla merkezî sinir sistemine ulaşır ve özellikle limbik sistemde belirgin davranışsal değişikliklere yol açar. Klinik olarak kuduz iki formda seyreder: öfkeli (%80) ve felçli (%20). Öfkeli formda görülen hidrofobi, halüsinasyon, ajitasyon ve saldırganlık; virüsün bulaşıcılığını artırmak amacıyla evrimsel süreçte geliştirdiği semptomlar olabilir. Kuduz virüsünün konak davranışını değiştirme mekanizmaları henüz tam olarak aydınlatılamamış olmakla birlikte, beyindeki serotoninerjik aktivitenin düşmesi ve nAChR alt tipleriyle etkileşimi bu davranışsal belirtilerle ilişkilendirilmektedir. Virüsün çoğalma döngüsü; hücreye giriş, viral protein sentezi ve tomurcuklanma evrelerinden oluşur. Çoğalma sırasında Negri cisimcikleri adı verilen inklüzyon yapılarında mRNA sentezi ve tam genom kopyalanması gerçekleşir. Sentezlenen pozitif iplikli [(+) sense] viral mRNA’lar, ribozomlarda okunarak viral proteinlerin üretiminde kalıp görevi görür. Yeni virionlar ise RNA’ya bağımlı RNA polimeraz (RdRp) enzimi vasıtasıyla kalıp RNA’nın yeniden negatif iplikli RNA’ya [(-) sense RNA] dönüştürülmesiyle meydana getirilir. Virion montajı ve hücre dışına salınımı, matriks (M) ve glikoprotein (G) proteinlerinin Taşıma İçin Gerekli Endozomal Sıralama Kompleksi (ESCRT) yolağıyla etkileşimi sayesinde tamamlanır. Kuduz virüsünün en dikkat çekici özelliklerinden biri ise bağışıklık sistemine karşı geliştirdiği çok katmanlı kaçış mekanizmalarıdır. Bu süreçte kritik rol oynayan fosfoprotein (P proteini), interferon (IFN) sinyal yolaklarını baskılayarak konağın doğuştan gelen bağışıklık yanıtını engeller. Özellikle STAT1 proteininin çekirdeğe geçişini durdurarak antiviral gen ifadesini baskılar; böylece virüsün bağışıklık yanıtından kaçarak yayılmasını kolaylaştırır. Hastalık belirtileri ortaya çıktıktan sonra neredeyse %100 ölümcül seyrettiği için erken müdahale ve aşı uygulaması, hem bireysel hem de toplumsal düzeyde vazgeçilmez bir koruma kalkanıdır.
1. Belirtiler Ortaya Çıktıktan Sonra Hayatta Kalma Olasılığının %1’in Altında Olduğu Bir Virüs
Zombi teması; popüler kültürün vazgeçilmez bir unsuru hâline gelerek filmlerden dizilere, dijital oyunlardan çizgi romanlara kadar her alanda kendine yer bulmuştur. Bu kurgusal figürlerin ortak özelliklerine baktığımızda ise aşırı saldırganlık, bilinç kaybı ve kontrolsüz bulaşıcılık gibi niteliklerin öne çıktığını görürüz. Söz konusu semptomların doğadaki somut karşılıklarını aradığımızda bu tablo, karşımıza bazen belirli böcekleri kontrolü altına alan Ophiocordyceps unilateralis mantarı bazen de sıcakkanlı canlıları saldırganlaştıran kuduz virüsü olarak çıkar.
Kuduz virüsü, vücuda genellikle enfekte bir hayvanın ısırığıyla girdikten sonra sinir hücreleri boyunca ilerleyerek beyne ulaşır. Beyne vardığında konağın zihinsel durumunu değiştirerek paranoya, ajitasyon, halüsinasyonlar ve ani öfke nöbetleri gibi bir dizi çarpıcı belirtiyi tetikler. Enfekte birey artık yalnızca bir hastalık taşıyıcısı değil, aynı zamanda kendi iradesi dışında hareket eden bir kukla hâline gelir. Zihinsel ve davranışsal kontrolün kaybı, zombi anlatılarındaki iradesizlik temasının tıbbi bir yansıması gibidir.
İşte bu noktada gerçeklikle kurgu arasındaki sınırlar bulanıklaşır. Resident Evil gibi oyunların ya da Romero’nun filmlerinin merkezine yerleştirilen “zombi” fikri, aslında kuduz virüsünün doğasına dair bilinçaltı bir farkındalığın dışavurumu olarak yorumlanabilir. Burada asıl korku sadece ölmek değil; benliğin kaybolması, düşüncenin yerini içgüdüsel bir şiddetin almasıdır. Kuduz, bu korkuyu moleküler düzeyde gerçek kılan nadir virüslerden biridir. Ne yazık ki günümüzde dahi dünya genelinde her yıl on binlerce insan bu virüs nedeniyle yaşamını yitirmektedir [1].
2. Klinik Belirtiler ve Alınabilecek Önlemler
İnsanlarda kuduzun klinik seyri iki temel biçimde ortaya çıkar: öfkeli (klasik/ensefalitik) kuduz (%80) ve uyuşuk (felçli/paralitik) kuduz (%20). Öfkeli kuduz; su içme girişiminde bulunulduğunda gırtlak, yutak ve solunum kaslarında ağrılı spazmlara yol açan, su korkusu (hidrofobi) ile belirginleşen şiddetli bir ajitasyon hâlidir. Halüsinasyonlar ve ani öfke nöbetleri de bu tabloya sıklıkla eşlik eder. Enfekte hayvanlar genellikle aşırı saldırganlık sergileyerek etraflarındaki nesnelere, diğer canlılara ve insanlara rastgele saldırır. Bu davranış değişiklikleri; virüsün yeni bir konağa aktarılmasını kolaylaştıracak biçimde, tükürük bezlerinde yüksek miktarda kuduz virüsünün salgılanmasıyla eş zamanlı olarak anda ortaya çıkar. Felçli kuduz ise kas güçsüzlüğü ve gevşek felç tablosuyla seyreder. Bu klinik tablo, hastalığın erken evrelerinde sıklıkla Guillain-Barré sendromu gibi diğer nörolojik rahatsızlıklarla karıştırılarak yanlış teşhise yol açabilmekteddir. Her iki biçimde de klinik belirtiler ortaya çıktıktan sonra hastanın yaşam süresi nadiren 7 günü geçer [2].
Kuduz gibi zoonotik enfeksiyonların önlenmesinde erken müdahale ve doğru profilaksi hayati önem taşır. Sokak hayvanlarıyla temas sonrası gelişen yaralanma veya riskli durumlarda, Türkiye Cumhuriyeti Sağlık Bakanlığı Kuduz Profilaksi Rehberi doğrultusunda şu adımlar gecikmeksizin izlenmelidir [3]:
- Yarayı Temizleyin: Yaralanan bölgeyi vakit kaybetmeden bol su ve sabunla en az 15 dakika boyunca iyice yıkayın. Bu işlem, virüs yükünü mekanik olarak uzaklaştırarak enfeksiyon riskini belirgin ölçüde azaltır. Isırık bölgesinin virüs barındırma potansiyeli nedeniyle temas üzerinden ne kadar süre geçmiş olursa olsun yıkama işlemi zorunludur.
- Antiseptik Uygulama: Yıkama işleminin ardından yaranın üzerine tentürdiyot veya povidon iyot gibi uygun bir antiseptik solüsyon uygulayın.
- Hemen Tıbbi Yardım Alın: En yakın sağlık kuruluşunun acil servisine başvurun. Burada risk değerlendirmesi yapılarak gerekli görüldüğü takdirde kuduz aşısı, kuduz immünoglobulini (antiserumu), tetanoz aşısı ve enfeksiyon riskine karşı antibiyotik tedavisi uygulanacaktır.
- Aşı Kartınızı Saklayın ve Doz Takvimine Uyun: Sağlık kuruluşunca verilen aşı kartındaki uygulama tarihlerine titizlikle uyun. Kuduz aşısı çoklu doz takviminden oluşur; koruyucu antikor düzeyinin sağlanabilmesi için tüm dozların eksiksiz tamamlanması şarttır.
Önemli Noktalar:
- Klinik Tablonun Geri Dönüşsüzlüğü: Kuduz, belirtiler ortaya çıktıktan sonra aşı yapılmadığı takdirde neredeyse %100 oranında ölümcül seyreder. Bu nedenle şüpheli bir hayvanla temasın ardından vakit kaybetmeksizin aşı ve profilaksi sürecine başlanması yaşamsal bir zorunluluktur.
- Mikro Sıyrık ve Çiziklerin Taşıdığı Tehlike: Enfeksiyonun başlaması için derin bir doku hasarı gerekmez; virüs en küçük bir tırnak çiziği, sıyrık veya mikro lezyon yoluyla dahi sinir uçlarına ulaşabilir. Benzer bir bulaşma riski, kedi tırmığı hastalığı (Bartonella henselae enfeksiyonu) gibi diğer zoonotik etkenlerde de görülmektedir.
- İkincil Enfeksiyon Riski: Isıran veya tırmalayan hayvan kuduz virüsü taşımıyor olsa bile hayvan ağız florasında bulunan anaerobik bakteriler, tetanoz ve pastörelloz gibi ciddi ikincil doku enfeksiyonlarına zemin hazırlayabilir.
- Mukozal ve Salya Teması: Kuduzun bulaşması yalnızca fiziksel ısırma veya tırmalama ile sınırlı değildir. Enfekte bir hayvanın salyasının doğrudan göze, ağza ya da vücuttaki açık bir yaraya temas etmesi de yüksek enfeksiyon riski doğurur.
- Aşılama Kapsamındaki Bireyler: Kuduz aşısı gerekli durumlarda gebelere ve çocuklara da güvenle yapılabilir.
- Temas Öncesi Profilaksi ve Rezervuar Çeşitliliği: Veteriner hekimler, barınak personeli, orman koruma görevlileri ve çiftçiler gibi yüksek maruziyet riski taşıyan meslek gruplarına temas öncesi profilaksi (koruyucu aşılama) uygulanmalıdır. Kuduzun yalnızca köpeklerden değil; tilki, kurt ve çakal gibi yabani memeliler ile koyun, sığır, at ve eşek gibi evcil toynaklılardan da bulaşabileceği unutulmamalıdır.
- Evcil Hayvanların Periyodik Bağışıklanması: Kuduzun insanlara geçişindeki en yaygın köprü evcil hayvanlar olduğundan, kedi ve köpeklerin periyodik kuduz aşılarının aksatılmaması zoonotik döngüyü kırmanın temel şartıdır.
Pediatrik Risk Faktörleri ve Ebeveyn Farkındalığı
Kuduz şüpheli temaslarda çocuklar, anatomik boyutları ve savunma reflekslerinin zayıflığı nedeniyle klinik tablonun en kırılgan grubunu oluşturur. Çocuklar, hayvanlarla oyun sırasında oluşan hafif çizik ve sıyrıkları çoğu zaman önemsiz görebilmekte ya da azar işitme korkusuyla ailelerinden gizleyebilmektedir. Bu nedenle açık alanda veya sokak hayvanlarının bulunduğu çevrelerde vakit geçiren çocukların bedenleri ebeveynler tarafından düzenli olarak kontrol edilmeli; şüpheli herhangi bir lezyon, tırmalama veya ısırık fark edildiğinde tereddüt edilmeden en yakın acil servise başvurulmalıdır.
3. Virüsün Detayları: Virüsün Yapısı ve Döngüsü
3.1. Virüsün Yapısı
İşe öncelikle virüsün genel yapısını ve genetik içeriğini inceleyerek başlayalım. Figür 1’de kuduz virüsünün genel mimarisi görülmektedir.
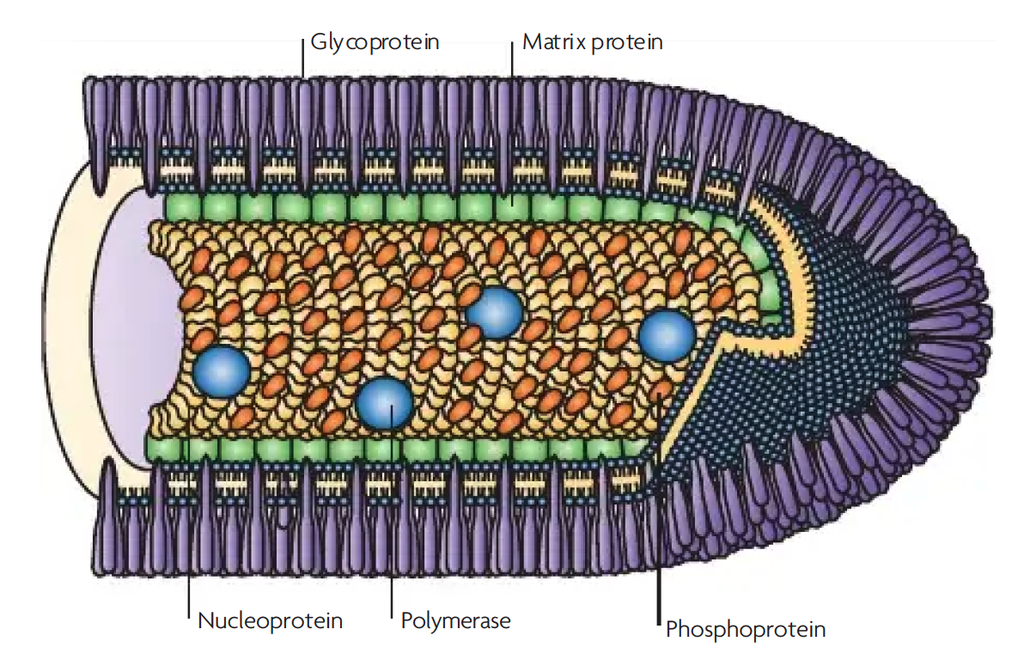
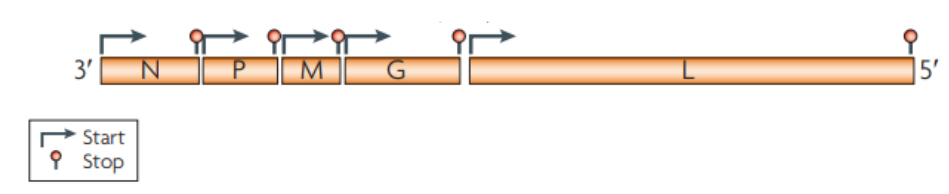
Kuduz virüsü (RABV), kendine özgü mermi şeklinde bir yapıya ve negatif iplikli tek sarmallı bir RNA [(-) sense RNA] genomuna sahiptir. Bu genom; 3’ ucundan 5’ ucuna doğru sırasıyla dizilmiş beş viral proteini şifreler: N, P, M, G ve L. Figür 1 üzerinde belirtildiği gibi bu proteinler görselde farklı renklerle ayrılmıştır: Nükleoprotein sarı (N), fosfoprotein turuncu (P), matriks proteini yeşil (M), glikoprotein mor (G) ve viral polimeraz enzimi ise mavi (L) renkle gösterilmiştir.
Viral RNA, genetik bilginin çekirdeğini oluşturan yapıyı kurmak üzere N proteinleri tarafından sıkıca sarılır. Bu yapı; P ve L proteinlerinin de katılımıyla sarmal bir ribonükleoprotein (RNP) kompleksi hâline gelir. Buradaki RNP, RNA ile proteinlerin bir araya gelmesiyle oluşan işlevsel bir birlikteliktir. RNP kompleksinin bu yapısı, viral genom hücrenin içine bırakıldığında yeni mRNA üretiminin ve çoğalmanın sorunsuz ilerleyebilmesi için gereklidir. Virüsün hücre içine girişi, hücre zarındaki almaçlare tutunup klatrin kaplı kesecikler yoluyla endozom adı verilen hücresel cebe alınmasıyla başlar. Endozom içindeki asidik ortam, G proteininde yapısal bir değişikliği tetikler ve virüsün zarı ile endozom zarının kaynaşmasını sağlar. Bu kaynaşma sonucunda RNP kompleksi sitoplazmaya salınır; burada viral RNA polimeraz tarafından tanınarak çoğalma süreci başlatılır [4].
RNP çekirdeğini çevreleyen viral zarın hemen altında matriks proteini (M proteini) yer alır. Bu protein, virüsün mermiye benzeyen derli toplu yapısını korumasına yardımcı olarak hem içteki nükleokapsidle hem de dıştaki yağ tabakasıyla doğrudan temas kurar. Yağlı zardan dışarıya doğru uzanan sivri uçlar ise G proteini tarafından oluşturulur. G proteini, hücre almaçlarını tanıyıp virüsün hücreye tutunmasını sağlar ve hücre zarlarının kaynaşmasına yardımcı olur. Döngünün sonraki aşamalarında hem M hem de G proteinleri, yeni virüs parçacıklarının toparlanmasında ve hücreden tomurcuklanarak dışarı çıkmasında da önemli görevler üstlenir [5].
3.2. Kuduz Virüsü Döngüsü
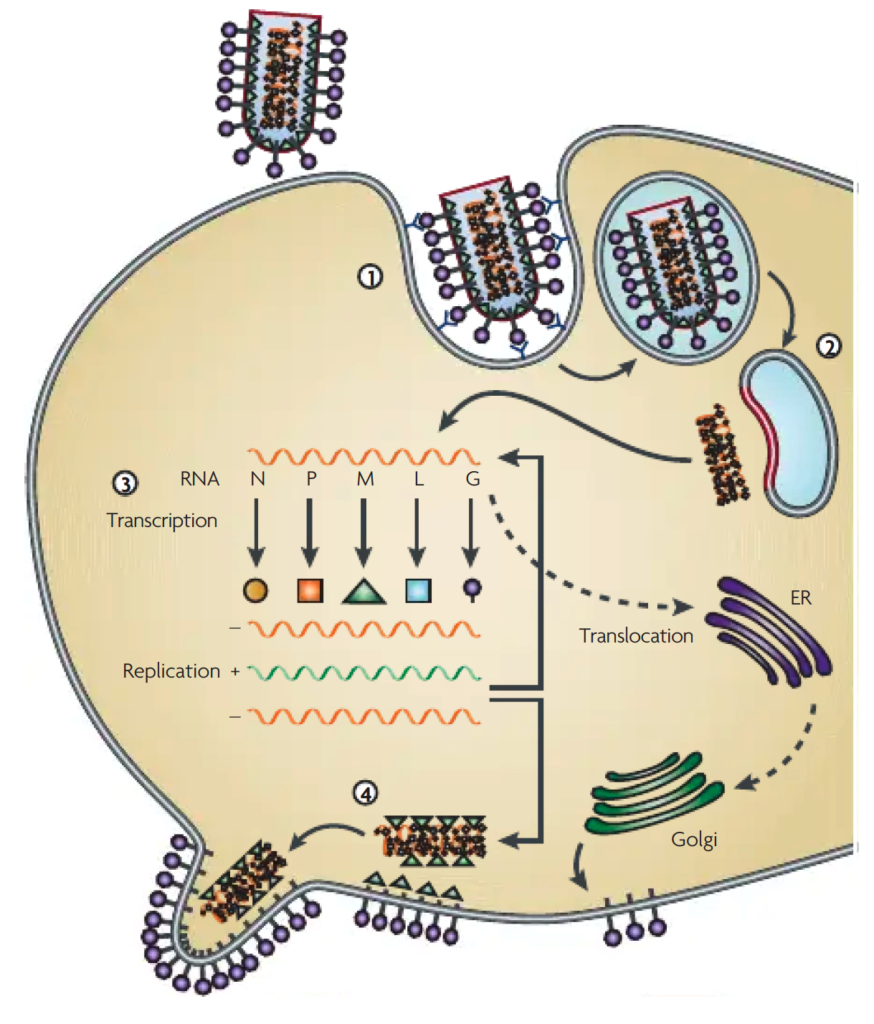
Kuduz virüsünün yaşam döngüsü temel olarak üç ana aşamadan meydana gelir: hücreye giriş, viral protein ve RNA sentezi ile yeni virionların montajı ve tomurcuklanması. Figür 3’te gösterildiği üzere bu döngü, virüsün bir hücreye girişinden yeni virüs parçacıklarının üretilip salınmasına kadar geçen tüm süreci kapsar. İlk aşamada virüsün dış yüzeyindeki glikoproteinler konak hücre zarındaki almaçlara bağlanır ve virüs hücre içine alınır. Ardından viral RNA sitoplazmaya salınır; burada hem viral proteinler hem de yeni genom kopyaları üretilir. Son aşamada ise sentezlenen bu proteinler ve RNA bir araya gelerek yeni virionları meydana getirir; olgunlaşan virüs parçacıkları hücre zarından tomurcuklanarak dışarı salınır. Enfeksiyonun yayılmasını ve virüsün çoğalmasını sağlayan temel biyolojik mekanizma bu döngüdür.
3.2.1. Hücreye Giriş
Kuduz virüsü (RABV) döngüsünün ilk adımı, virüsün konak hücreye tutunmasıdır. Bu tutunma, virüsün dış yüzeyinde yer alan glikoprotein (G proteini) ile hücre yüzeyindeki özgül almaçlar (reseptörler) arasındaki etkileşim sayesinde gerçekleşir. G proteini, konak hücrenin endoplazmik retikulumunda üretilir ve virüs parçacıklarının yüzeyinde üçlü sivri çıkıntılar meydana getirecek şekilde bir araya gelir. G proteini taşımayan bir kuduz virüsü hücrelere tutunup içeri giremez; bu durum söz konusu proteinin enfeksiyonun başlaması için ne denli vazgeçilmez olduğunu açıkça gösterir [6].
Kuduz virüsünün hücreye girişinde rol oynayan çeşitli almaç adayları üzerinde kapsamlı araştırmalar yürütülmüştür. Bu süreçte öne çıkan temel yapılar; nikotinik asetilkolin almacı (nAChR), nöronal hücre yapışma molekülü (NCAM) ve p75 nörotrofin almacıdır (p75NTR). Kuduz virüsü öncelikle sinir ve kasların buluştuğu bölgelere, yani nöromüsküler kavşaklara (NMK) tutunur. Virüs, yüzeyindeki G proteini vasıtasıyla NMK bölgelerinde bol miktarda bulunan nAChR yapılarına bağlanır. Bu almaçlar kas hücrelerinde yoğun, sinir hücrelerinde ise daha seyrek bulunur. Bu dağılım, virüsün ilk temas anında neden öncelikle kas dokusuna yerleşme eğiliminde olduğunu açıklamaktadır. Virüs bu kavşak noktalarında çoğalarak çevredeki sinir uçlarına çok daha kolay ulaşır ve yayılma evresine geçer. Yani nAChR almaçları virüsün hem kas hücrelerine girişini kolaylaştırır hem de sinir hücrelerine erişmesini hızlandırır [5].
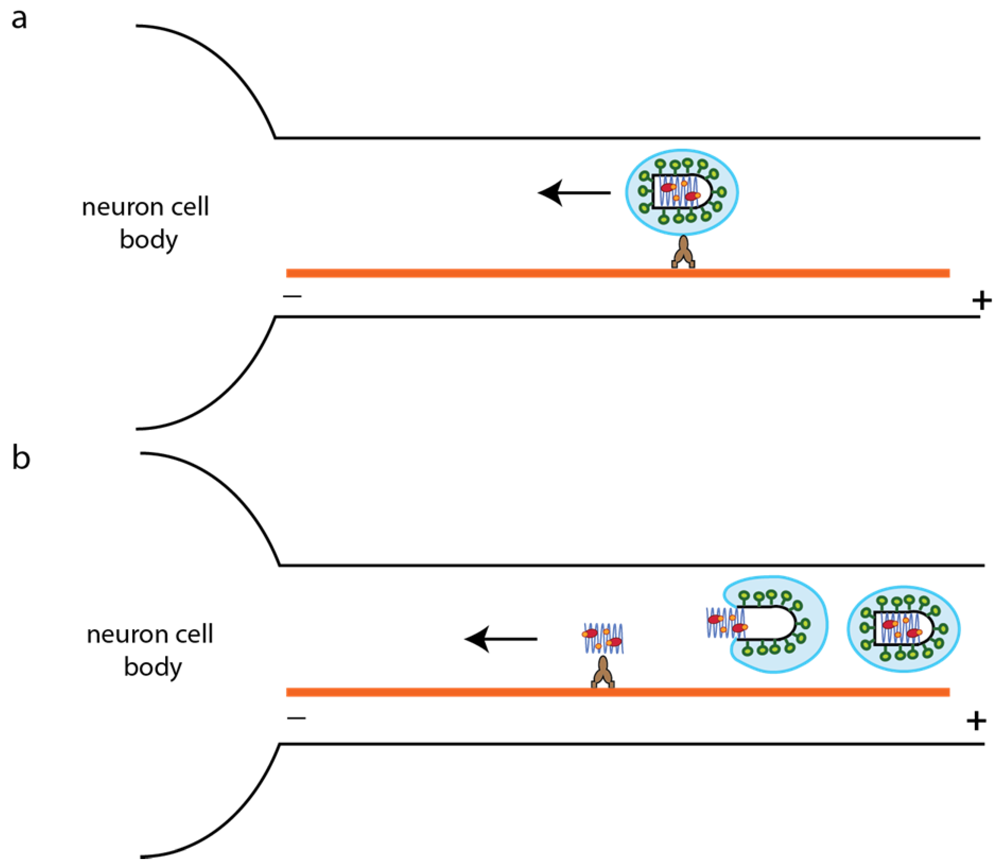
Kuduz virüsünün akson terminallerine ilk girdiği uç bölge, yeni proteinlerin sentezlenebilmesi için gerekli hücresel mekanizmayı barındırmaz; bu nedenle virüsün çoğalabilmesi ve genetik şifresini okutabilmesi için akson boyunca ilerleyip nöronun ana gövdesine ulaşması şarttır. Bu hücre içi yolculuk, hücrenin iskeletini oluşturan mikrotübül ağı (MT) ve bu ağ üzerinde yük taşıyan motor proteinler (dynein ve kinesin) sayesinde yürütülür. Hücresel taşıma düzeninde kinesin motorları hücre gövdesinden uçlara doğru ileriye dönük (anterograd) taşımadan sorumlu iken dynein ise uçlardan hücre gövdesine doğru geriye dönük (retrograd) taşımayı üstlenir. Hücrenin kendi organellerini taşımakta ve iç düzenini sağlamakta kullandığı bu dynein motor mekanizması, kuduz virüsü tarafından adeta bir taşıma aracı gibi kullanılır. Virüs, mikrotübüller ve dynein motorları üzerinden geriye doğru ilerleyerek merkezî sinir sistemine ve beyne bu gizli hat üzerinden ulaşır [5].
3.2.1.1 Kuduz Virüsü Konak Davranışını Nasıl Değiştirir?
Saldırganlık, aşırı hareketlilik ve enfekte hayvanların kontrolsüz ısırma eğilimi, kuduzun bulaşıcılığını önemli ölçüde artıran temel unsurlardır. Kuduz virüsünün konak davranışını nasıl değiştirdiği biyolojik olarak henüz tam anlamıyla aydınlatılamamıştır; buna karşın araştırmacıların üzerinde durduğu bazı güçlü mekanizmalar bulunmaktadır.
Bu davranış değişikliklerinin ilk olarak beyindeki düşük serotoninerjik aktivite ile ilişkili olabileceği düşünülmektedir. Beynin rafe çekirdeklerinde biriken kuduz antijenleri, normal kimyasal sinir iletim ulağı (nörotransmitter) iletimini bozarak serotonin üretiminde aksamalara yol açabilir. Nöronlar arasındaki bu kimyasal dengesizlik ise enfekte canlıda artan bir saldırganlık (agresyon) tablosu şeklinde dışa vurur.
Bir diğer hipotez ise nAChR almaçları ile kuduz virüsünün G proteini arasındaki etkileşimin saldırganlığı tetikleyebileceğini öne sürer. Nikotinik asetilkolin almaçları (nAChR); beyinde saldırganlık, dürtüsellik, algı ve dikkat gibi karmaşık davranış süreçlerini düzenlemede kritik görevler üstlenir. Örneğin hayvanlara nikotin verilmesinin saldırgan tutumları yatıştırdığı bilinmektedir; benzer bir durum insanlarda da gözlemlenir.
Özellikle nAChR yapısının α7 alt tipi, dinginlik ve sükûnet hâlinin korunmasında kilit bir rol oynamaktadır. Deney hayvanlarında hipokampus bölgesindeki α7 alt tipinin doğrudan saldırganlığı denetlediği görülmektedir çünkü bu almacın işlevini yitirmesi hem farelerde hem de insanlarda belirgin bir saldırganlık artışıyla sonuçlanır.
Kuduz virüsünün saldırganlık artışına doğrudan α7 alt tipine özgül nAChR almaçları üzerinden yol açıp açmadığını netleştirmek adına, farklı reseptör alt tiplerini ve ayrıntılı davranış testlerini kapsayan yeni araştırmaların yürütülmesi zorunludur [6].
3.2.2 Viral Protein Sentezi ve Çoğalma
Virüs akson boyunca ilerleyip nöron gövdesine ulaştıktan sonra hem protein sentezi hem de viral RNA üretimi için elverişli biyokimyasal ortama kavuşur. Virüsün genetik içeriğine ve bu genlerin ürünlerine, yani proteinlerine baktığımızda karşımıza RNA’ya bağımlı bir RNA polimeraz (RdRp) enzimi çıkar. Bu enzim sayesinde hem yeni mRNA molekülleri üretilir hem de viral genetik materyalin kopyalanması sağlanır. Her iki süreçte de kalıp olarak nükleoprotein ile viral RNA’nın oluşturduğu karmaşık yapı kullanılır.
Kuduz virüsüne ait genetik materyalin ve proteinlerin sentezi, enfekte nöronların sitoplazmasında beliren ve “Negri cisimcikleri” olarak adlandırılan inklüzyon bölgelerinde gerçekleşir. Negri cisimciklerini, virüs proteinlerinin ve yeni üretilen genetik kopyaların adeta bir fabrika gibi yoğun biçimde toplandığı hücresel üretim merkezleri olarak tanımlamak mümkündür.
Kuduz virüsü negatif iplikli bir RNA [(-) sense RNA] genomu taşıdığından hücre içine girdiğinde konak ribozomları tarafından doğrudan okunamaz. Bu nedenle viral genlerin proteine dönüştürülebilmesi için öncelikle negatif iplikli RNA kalıp alınarak bunun tamamlayıcısı niteliğindeki pozitif iplikli [(+) sense] mRNA moleküllerinin sentezlenmesi gerekir. Yalnızca bu pozitif iplikli mRNA’lar ribozomlarca tanınabilir ve protein sentezinde görev alabilir hâle gelir.
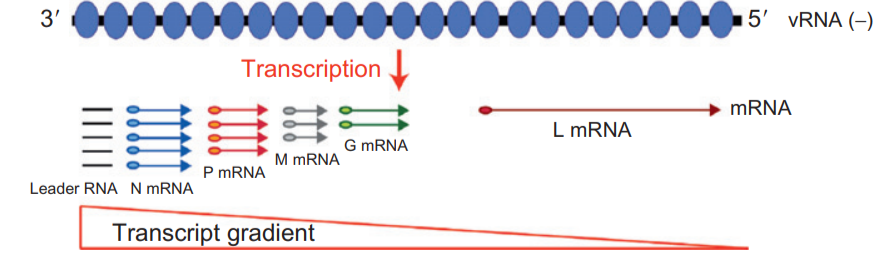
Daha önce virüsün yapısında değinildiği üzere N proteini viral RNA’yı sıkıca sararak nükleokapsidi meydana getirir. Bu yapısal durum karşısında L polimeraz ve P proteini kompleksi, genetik şifreye ulaşabilmek için nükleokapsid ile doğrudan etkileşime girer. Transkripsiyon süreci viral genomun 3’ ucundan başlar; sırasıyla öncü (leader) RNA ile N, P, M, G ve L genlerine ait mRNA’ların sentezi gerçekleştirilir.
Sentezin başlaması ve durması için genom üzerinde özel sinyal dizilimleri bulunur. Viral RNA polimeraz enzimi bu dizilimler aracılığıyla sentezi başlatır ve sonlandırır. Her bir gen için ayrı başlangıç ve bitiş sinyalleri yer aldığından enzimin bir genin sentezini tamamlayıp kompleksten ayrılır, ardından sıradaki genin başlangıç dizilimine bağlanarak işlemine devam eder. Üretilen yeni mRNA’ların miktarlarına bakıldığında, 3’ ucuna yakın genlerden üretilen mRNA sayısının, 5’ ucuna yakın olanlara kıyasla belirgin şekilde fazla olduğu görülür. Bunun nedeni, her gen geçişinde şablondan ayrılan viral RNA polimeraz enziminin bir sonraki başlangıç dizilimine her zaman başarıyla yeniden tutunamamasıdır.
Böylece proteine tercüme edilecek viral mRNA’lar üretilmiş ve ardından viral proteinler sentezlenmiş olur. Peki, viral genomun kendisi nasıl kopyalanacaktır? Virüs hücreye negatif iplikli tek bir parça hâlinde girmişti; şu an ise bizim elimizde parça parça üretilmiş pozitif iplikli mRNA’lar bulunmaktadır. Bu durumda virüs, tam boy bir negatif iplikli genoma yeniden nasıl kavuşacaktır?
Viral çoğalmanın (replikasyonun) gerçekleşebilmesi için genomun baştan sona eksiksiz ve kesintisiz biçimde kopyalanması zorunludur. Ancak yukarıda belirtildiği gibi genom üzerindeki durma sinyalleri, polimeraz enziminin durmasına ve şablondan ayrılmasına yol açmaktadır. Burada kilit nokta, RNA’ya bağımlı RNA polimeraz enziminin bu sinyallere takılmadan, şablon olarak kullandığı nükleoprotein ve negatif iplikli RNA kompleksi boyunca kesintisiz ilerlemesini sağlamaktır.
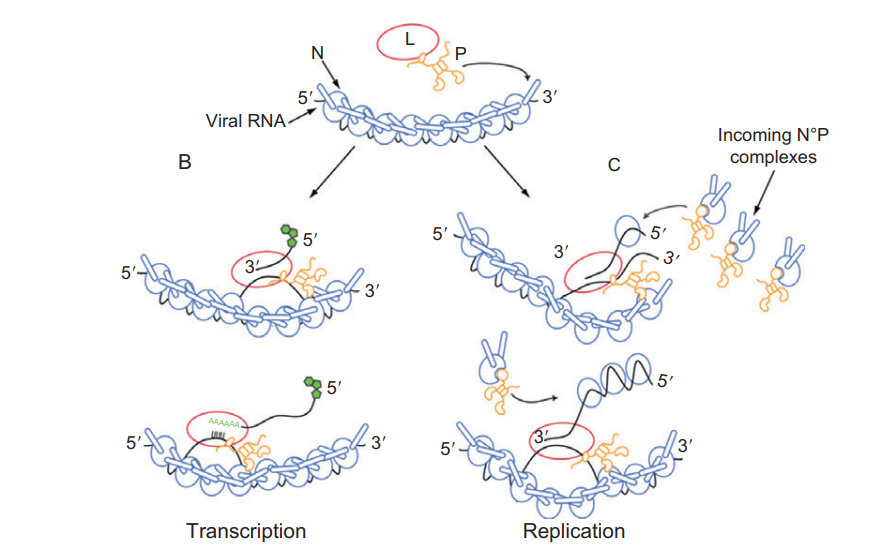
Transkripsiyonun aksine genom replikasyonu, ortamda kesintisiz bir nükleoprotein (N proteini) üretimi bulunmasını gerektirir. Ortamda biriken serbest N proteinleri, yeni sentezlenmekte olan RNA zincirine anında bağlanarak onu sarmalar. Bu bağlanma, RNA üzerindeki durma sinyallerini maskeleyerek polimerazın bunları algılamasını engeller. Durma sinyalleri devre dışı kaldığında ise RNA’ya bağımlı RNA polimeraz enzimi duraksamadan ilerler ve tüm viral genomu baştan sona tek parça hâlinde kopyalar.
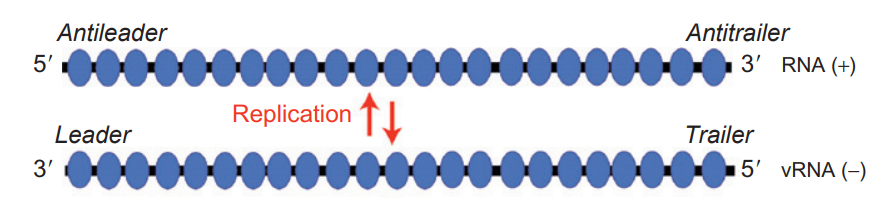
Bu ilk kopyalama sürecinde elde edilen tam boy RNA, negatif iplikli orijinal genom şablon alındığı için pozitif kutupludur [(+) sense RNA]. Ardından viral polimeraz enzimi bu pozitif iplikli ara kalıp üzerine bağlanarak virüsün asıl genomu olan negatif iplikli [(-) sense] viral RNA’yı sentezler. Yeni sentezlenen bu nihai negatif iplikli genomlar da tıpkı öncekiler gibi N proteinleri tarafından sarılarak korunur ve yeni virionların yapısına katılmaya hazır hâle gelir [7].
Böylece kuduz virüsünün hem yeni genetik materyali hem de gerekli tüm yapısal proteinleri üretilmiş olur. Sırada bu parçaların kusursuz bir uyumla bir araya gelerek yeni virionları meydana getirmesi ve hücre dışına salınması süreci yer almaktadır.
3.2.3. Virionun Montajı ve Hücre Dışına “Tomurcuklanması”
Bir virüsü, kalabalık bir limandan denize açılan minik bir gemi gibi hayal edebilirsiniz. Kuduz virüsü gibi negatif iplikli RNA virüslerinde bu gemi indirme süreci, yani parçaların bir araya gelmesi (montaj) ve tomurcuklanma, çoğalma döngüsünün kritik bir geç evresidir. Bu süreçteki kilit oyuncu ise adeta bir tersane şefi gibi hareket eden viral matriks proteinidir (M proteini).
M proteininin üzerinde yer alan L bölgesi (late domain) bir vinç gibi çalışır. Bu vinç; konak hücrenin rıhtım işçileri gibi çalışan proteinlerini, yani Taşıma İçin Gerekli Endozomal Sıralama Kompleksi (ESCRT) yolağının bileşenlerini doğrudan bölgeye toplar. ESCRT sistemi normal şartlarda hücrenin kendi geri dönüşüm ve atık bertaraf mekanizmalarını yönetir ancak virüs kendi çoğalma hedefleri doğrultusunda bu altyapıyı ustalıkla ele geçirir. Böylece virüs, hücresel işçileri olağan kargo görevlerinden alıkoyarak kendi parçacıklarını hücre dışına taşımaya mecbur bırakır.
Kuduz virüsünü de barındıran Rhabdoviridae ailesindeki virüslerde matriks proteini, bir diğer yapısal bileşen olan glikoprotein (G) ile sıkı bir eş güdüm içinde çalışır. Matriks proteini yeni viral parçacığı konak hücre zarından dışarıya doğru iten temel mekanik gücü sağlarken glikoprotein ise yeni virionun çıkış yapacağı hücre zarında kavisli bir çıkıntı, yani bir tomurcuk oluşturmaya yarayan destekleyici bir iskele vazifesi görür. Bu durum, tersane işçilerinin geminin suya rahatça kayabilmesi için kızağa kusursuz bir eğim kazandırmasına benzer.
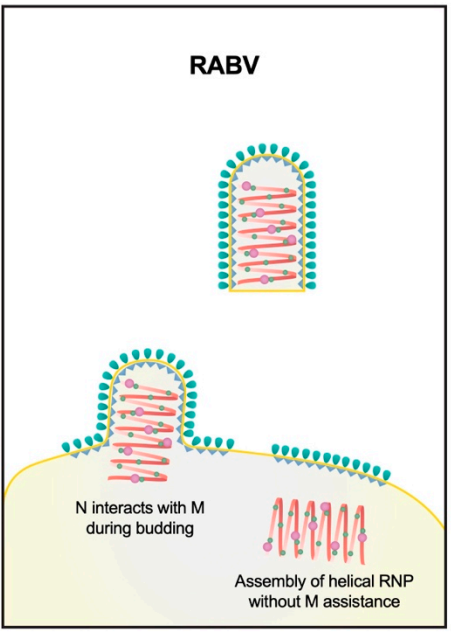
Peki, matriks proteinini bu denli usta bir gemi yapımcısı kılan nedir? Bu protein üç temel biyokimyasal avantaja sahiptir. İlk olarak tomurcuklanma sahasında limanın suyu işlevini gören hücre zarıyla doğrudan fiziksel temas kurabilir. İkincisi, kendi kendine gruplar hâlinde kümelenerek hücre zarının altında güçlü bir mühendislik ağı örebilir. Üçüncüsü ise ESCRT sistemindeki hücresel işçileri sahaya çağıran kritik L bölgelerine (late domains) sahip olmasıdır.
Taşınan bu L bölgeleri virüs için yaşamsal bir öneme sahiptir. Bu bölgeler işlevini yitirdiğinde yeni virüs parçacıkları hücre zarından kopup ayrılamaz; tıpkı limanda kalıcı olarak demir atmış ve hareket kabiliyetini yitirmiş gemiler gibi hücre yüzeyine saplanıp kalır. L bölgeleri, ESCRT proteinlerini özgül olarak tanıyıp tomurcuklanma noktasına getirdiğinde bu hücresel mekanizma tomurcuğun boynunu sıkarak konak hücre zarından koparır ve yeni hücreleri enfekte etmeye hazır bağımsız virionları serbest bırakır. Bu son hamle, rıhtım işçilerinin nihayet palamarları çözerek gemiyi açık sulara uğurlamasına benzer.
Özetle virüs, yeni nesil virionları inşa etmek ve hücre dışına salmak amacıyla konak hücrenin kendi taşıma mekanizmalarını son derece verimli bir biçimde kullanır. Sahip olduğu L bölgeleriyle matriks proteini bu organizasyonun merkezî koordinatörüdür; hem virionların eksiksiz salınmasını hem de viral yaşam döngüsünün kesintisiz sürmesini güvenceye alır [9].
4. Kuduz Virüsü ve Bağışıklık Sisteminden Kaçış
İnterferonlar (IFN), viral çoğalmayı durduran ve hücreler arası savunma iletişimini sağlayan özelleşmiş sitokinlerdir. Bu moleküller, antiviral genleri aktive ederek konağın doğuştan gelen bağışıklık (doğal bağışıklık) yanıtını tetikler. Doğuştan gelen bağışıklık sistemi ise virüsün vücuda girdiği andan itibaren karşılaştığı ilk savunma hattıdır. Çoğalma sırasında hücre içinde beliren yabancı nükleik asitlerin tanınması, bağışıklık yanıtını başlatan en kritik adımların başında gelir. Hücreye yabancı bu genetik materyallerin tanınması, örüntü tanıma almaçları (PRR) vasıtasıyla sağlanır. Vücudumuzda dendritik hücrelerde bulunan Toll benzeri almaçlar (TLR), bu reseptör grubunun en bilinen örneklerindendir [10]. Aktive olan PRR yapıları, hücre içi sinyal yolaklarını uyararak geniş çaplı bir interferon üretimini başlatır. Örneğin dendritik hücreler viral bir enfeksiyona maruz kaldıklarında yoğun biçimde tip 1 interferon üretir [11]. Sentezlenen tip 1 interferonlar ise komşu hücrelerdeki antiviral genleri uyarır ve bu genlerin ürünleri virüs döngüsünün çeşitli aşamalarına doğrudan müdahale eder [10].
Kuduz virüsünün en çarpıcı ve ölümcül niteliklerinden biri, konağın bu güçlü bağışıklık kalkanını ustalıkla atlatabilmesidir. Virüsün başvurduğu temel kaçış stratejileri arasında; interferon sinyal iletiminin durdurulması, antijen sunumunu sağlayan majör histouyumluluk kompleksinin (MHC) hücre yüzeyine çıkışının engellenmesi ve dendritik hücrelerin bağışıklık uyarıcı işlevlerinin felç edilmesi yer alır. İnterferon yanıtının engellenmesinde kuduz virüsünün fosfoproteini (P proteini) üzerinde kapsamlı araştırmalar yürütülmüştür. Kuduz virüsünün P proteini, hem viral çoğalmada hem de konak hücrenin bağışıklık mekanizmasından kaçışında merkezi bir rol oynar. Bu fosfoprotein, ribonükleoprotein (RNP) kompleksinde nükleoprotein ile viral RNA’ya bağımlı RNA polimerazı birbirine bağlayarak viral RNA sentezi sırasında polimeraz için vazgeçilmez bir yardımcı faktör olarak görev yapar. Bununla birlikte P proteini, konak hücrenin tip 1 interferon yanıtını engelleyerek fosforile STAT1 proteininin çekirdeğe geçişini ve orada birikmesini önler. STAT1 çekirdeğe ulaşamadığında virüsün çoğalmasını durduracak antiviral genler okunamaz. Söz konusu bağışıklık kaçış mekanizması, virüsün hastalık yapıcı gücü (patojenitesi) açısından son derece kritiktir çünkü interferon yanıtı konağın doğuştan gelen bağışıklık savunmasının temel omurgasıdır [12].